Mostrando entradas con la etiqueta biología evolutiva. Mostrar todas las entradas

4 de marzo de 2013

Nuevos Caminos en la Evolución Humana


NUEVOS CAMINOS EN LA EVOLUCIÓN HUMANA
Encuadrado en el ciclo de conferencias de Los Martes en el Museo (XII edición).
MUSEO DE ALBACETE
5 AL 14 DE MARZO, 2013
20 H.


Nuevos caminos en la evolución humana hace referencia a un enfoque dinámico de los estudios evolutivos, las conferencias no son una descripción de lo que fue la evolución del género Homo; si no que el estudio, contado por algunos de los autores más influyentes y más innovadores en la materia, se convierte en motivo de explicación y difusión.

El ciclo está conformado de manera que no sólo se presentan los hallazgos de los equipos investigadores, además nos muestran de primera mano las líneas de estudio más novedosas y prometedoras en el campo de la evolución humana. De este modo se ofrece una visión muy actualizada contada por los mismos artífices de los estudios de los aspectos anatómicos, el paleoambiente, los estudios de comportamiento y la genética de esos grupos humanos.

No cabe duda que los hallazgos habidos en la Península Ibérica han contribuido en gran manera a despertar la curiosidad e interés por las múltiples facetas asociadas a la evolución humana. Varios equipos de investigadores de gran prestigio, estudian desde hace años los aspectos más determinantes de este proceso evolutivo, algunos de los cuales se sintetizan en este ciclo de conferencias.


CONFERENCIAS:

5 de marzo
Dr. D. Juan Luís Arsuaga Ferreras
Director del Centro UCM-ISCIII de evolución y Comportamiento Humanos
El parto en la evolución humana

6 de marzo
Dr. D. Enrique Baquedano Pérez
Director Museo Arqueológico Regional de la Comunidad de Madrid
La cooperación social cómo motor de la evolución humana

7 de marzo
Dr. D. Antonio Rosas González
Departamento de Paleobiología, Museo Nacional de Ciencias Naturales
Los fósiles del Sidrón: Canibalismo y evolución de los Neandertales

12 de marzo
Dr. D. José Miguel Carretero
Director del Laboratorio de Evolución Humana de la Universidad de Burgos
Los homínidos de Atapuerca


13 de marzo
Dr. D. Carles Lalueza-Fox
Investigador del Institut de Biologia Evolutiva CSIC-UPF
ADN, genética y evolución

14 de marzo
Dra. Dña. María de los Ángeles Querol
Catedrática de Prehistoria, UCM
La mujer en los discursos sobre la evolución humana

DIRECCIÓN: Dr. D. Enrique Baquedano Pérez
COORDINACIÓN: D. Héctor Bolívar Sanz

ORGANIZACIÓN:
Junta de Comunidades de Castilla-La Mancha, Consejería de Educación, Cultura y Deportes
Asociación de Amigos del Museo de Albacete
Fundación Caja Rural, Global Caja

COLABORACIÓN:
Universidad de Castilla-La Mancha, Facultad de Medicina de Albacete

10 de junio de 2010

La sexualidad humana, un rompecabezas evolutivo

Resumen-conclusiones de la conferencia del Dr. Ambrosio García Leal impartida en el IX Curso de Antropología Biológica de la Universidad de Alicante - abril de 2010.

La sexualidad humana está íntimamente ligada a multitud de rarezas, si lo miramos en comparación con el mundo animal, que implican un gasto de energía que resulta extraño o desfavorecido evolutivamente.

Todos los biólogos que han intentado explicar la evolución humana desde un punto de vista etológico han terminado implicando la evolución de la monogamia del sistema de apareamiento humano, no como aportación cultural moderna si no como una característica intrínseca a la evolución humana. En sistemas monógamos perfectos o completamente promiscuos la selección sexual no ocurre (o es mínima), de forma que el dimorfismo sexual humano no es explicable según estas pautas.
El dimorfismo sexual se atribuye a la selección sexual por parte de alguno de los sexos (como bien apuntó Darwin en su día), bien podría ser una selección del macho más fuerte por las hembras o por competencia entre los mismos machos, o una selección de las hembras con mejor rango social o mejor salud.

La excitación sexual, por delante.
Entre los homínidos actuales (orangutanes, gorilas, chimpancés y humanos) la selección sexual ha derivado en que dos grupos se mantengan con un dimorfismo sexual marcado en el tamaño, pero carente de otros caracteres sexuales llamativos (orangutanes y gorilas), mientras que chimpancés y humanos somos marcadamente dimórficos. Los chimpancés hembras poseen una zona genital que se hincha durante la época de ovulación, de forma que anuncia el estado fértil. En hembras humanas el peso del atractivo sexual recae, entro otros en las mamas, pero estas no anuncian el estado del ciclo sexual si no que su funcionamiento es distinto.

Las señales sexuales humanas de incitación al cortejo, siendo los más evidentes el desarrollo de pechos en las mujeres, difieren de otras señales del grupo de los grandes primates en la duración de la señal. Dado que el atractivo sexual de las hembras humanas se correlaciona con el ciclo vital y no con el ciclo estral las hembras humanas consiguen una ocultación del periodo de máxima fecundidad y un interés continuo del macho, independientemente del ciclo sexual. Además estas señales se han trasladado hasta la zona delantera del cuerpo, que es la primera parte que se ve al encontrarse una persona e interaccionar con ella, como consecuencia del bipedismo.
Tradicionalmente se ha atribuido el desarrollo de las mamas a una mayor capacidad de producción de leche materna, pero estudios recientes han echado por tierra esa idea. Las hembras de los primates proporcionan lactancias copiosas a sus crías pero carecen de mamas hinchadas. Dado que de el volumen total de una mama sólo una pequeña fracción corresponde al tejido glandular y la otra parte es en su mayoría grasa, está claro que las mamas humanas son un rasgo sometido a la selección por parte de los machos adultos y no por las crías lactantes [1].

Si las mamas grandes y prominentes son para los machos un reclamo sexual, ¿por qué estas pierden sus atributos más llamativos durante las primeras lactancias? ya que al menos así ocurre cuando las mujeres no se ven afectadas por las ideas culturales occidentales: retraso de la edad de maternidad y acortamiento del periodo de lactancia, así como empleo de sujetadores para conservar los pechos en una posición elevada. Bajo un punto de vista monógamo, una mujer recién llegada a la edad reproductiva requiere únicamente de las señales de atracción durante el periodo de tiempo en que busca pareja. Como ya se había mencionado antes, en humanos, a diferencia de chimpancés o bonobos, el atractivo sexual se correlaciona con el ciclo vital, entre otras cosas por que los atributos atractivos humanos se distribuyen por todo el cuerpo (caderas, cara, pecho, etcétera). De esta forma podemos pensar que para los machos humanos el atractivo sexual de las hembras se asocia a pedomorfía / neotenia (mantener rasgos juveniles en periodos adultos reproductivos), de forma que las mujeres mantienen esos rasgos atractivos para los hombres hasta edades más o menos avanzadas.
Se suele atribuir el mantener este periodo de atractivo o excitación del macho por parte de la hembra a una ocultación del estro de forma que no exista una correlación entre los mensajes sexuales dispuestos por las hembras y la máxima posibilidad de fecundación.

La ovulación oculta: ¿Atar al macho?
Esta característica tan propia de las hembras humanas suele ser atribuida a diferentes teorías de comportamiento:
  • El sexo como cebo conyugal. La hembra emplearía la excitación continua del macho para mantener la monogamia y evitar una supuesta promiscuidad inherente a la personalidad del macho. No obstante en muchas especies estrictamente monógamas, como pueden ser muchas aves, las relaciones sexuales están restringidas únicamente a los periodos de cría; lo que no se corresponde con la actividad sexual humana.
  • Teoría del padre confiado. El macho consorte tiene más posibilidades de engendrar descendencia que los machos oportunistas que puedan copular con su pareja, ya que al desconocer el periodo de ovulación la mejor manera de asegurar la fecundidad es copular repetidamente en varios días. Bajo estas condiciones es común pensar que la evolución de la monogamia requiere la confianza en la paternidad.
  • Teoría de la esposa infiel. Implica que la evolución oculta no beneficia al macho consorte si no a la hembra, si no que puede despistar al macho para poder copular con otro macho. No obstante la incapacidad de la hembra por conocer exactamente su pico de fertilidad máxima no favorece para nada a esta estrategia.
  • Teoría del macho-ogro. En multitud de grupos de mamíferos los machos practican el infanticidio de recién nacidos con la intención de romper el periodo de lactancia y provocar una vuelta al ciclo reproductivo de la hembra. En humanos se evita manteniendo la recepción de machos por las hembras incluso en periodos de cría, aunque también se evita el infanticidio con la promiscuidad de la hembra, de forma que el macho corra el riesgo de acabar con uno de sus propios descendientes si mata a una cría.
  • Teoría del comercio carnal. La continua posibilidad de cópula permite acceder a las hembras de manera ininterrumpida a los recursos que los machos podían ofrecerles para ganárselas. Se teoriza que la actividad sexual femenina se fue aumentando a lo largo del ciclo menstrual a la vez que la carne fue introduciéndose en la dieta humana, si pensamos que la carne que pueda obtener la hembra viene de parte de los machos cazadores del grupo.

Competencia espermática
Existen varios ejemplos de especies en las cuales los machos se ven excitados psicológicamente al observar una cópula, aunque lo normal es encontrarnos con que la reacción mas extendida en el mundo animal es tratar de expulsar al macho que está copulando para tomar su puesto. Una excitación sexual que facilite una cópula, aún a pesar de que la hembra ya haya sido inseminada, favorecerá de forma general a aquellos machos que se atrevan a copular con la hembra que a aquellos que no lo hagan. En la mayoría de las especies del reino animal las hembras se aparean con varios machos durante el periodo de celo. Dado que los espermatozoides pueden sobrevivir varios días en el interior del aparato genital femenino, una hembra promiscua puede acumular esperma de varios machos en el momento en que se produzca la ovulación, de forma que la interacción entre los espermatozoides de varios machos y el óvulo de la hembra provoca el fenómeno de competencia espermática [2]. Esta competencia ha provocado que cada espermatozoide no compita solo con el resto de espermatozoides de un solo macho si no que deberá vérselas con toda una legión de espermatozoides de otros machos que tratarán de nadar mas rápidamente, sobrevivir mas tiempo o llegar mas al fondo que el resto.
Como los machos humanos no conocen el estado de fecundidad de la hembra, la estrategia a seguir por los machos ha sido “racionar” la cantidad de esperma inoculado a la hembra, de forma que se evite un derroche de espermatozoides cada vez se copulara con una hembra sin óvulos maduros. Así como primates como los chimpancés poseen unos testículos con un tamaño relativo grande para aportar el máximo posible de esperma a la hembra durante el periodo de ovulación de esta, el macho humano busca repartir cantidades mas moderadas en tiempos distintos, buscando que por azar coincida una de las cópulas con el descenso del óvulo en la hembra. El tamaño y la forma del miembro viril humano también difiere enormemente de los observados en el resto de primates, si en estos últimos son largos y delgados, terminados en punta, la forma característica del humano es un cilindro con un pequeño ensanchamiento en el ápice, que denominamos glande. Este ensanchamiento del glande provocará una presión sobre el esperma depositado por otro macho, provocando su expulsión hacia las paredes laterales de la vagina y permitiendo que el semen propio se deposite de forma más favorable para la fecundación.
Dado que el último macho humano en copular es el que tiene más papeletas para fecundar a la hembra por el mecanismo de expulsión del semen de los machos competidores, aparece en nuestra especie una reinvención del papel de los orgasmos.

El orgasmo en la evolución humana
El orgasmo en los machos tiene como finalidad eyectar el líquido seminal y los espermatozoides con la mayor presión y velocidad posibles y que de esta forma los gametos penetren en la vagina de la forma mas ventajosa para la fecundación. Por esta razón la eyaculación humana está íntimamente ligada al orgasmo como sensación placentera.
Es posible que el orgasmo femenino sea una característica exclusiva de las hembras humanas en condiciones naturales.
A diferencia de otros primates como los chimpancés en los cuales el coito dura apenas unos segundos, en humanos puede llegar a ser bastante largo. A diferencia de los orgasmos masculinos este no se ve sucedido de un periodo refractario, de forma que una mujer puede experimentar orgasmos consecutivos, y puede ser una baza que apoye la existencia de cierta promiscuidad entre las hembras humanas y favorezca la competencia espermática. También hay que señalar que la sensación de placer en la hembra no coincide (o no suele coincidir) con el momento de liberación de los gametos [3].
Existe una teoría que relaciona la aparición (o al menos el empleo normal) del orgasmo femenino como mecanismo de retener el esperma en las hembras bípedas. El orgasmo de la hembra y la laxitud posterior, con una leve sensación de fatiga y cierta somnolencia forzará un breve periodo poscoital, breve pero suficiente para permitir la progresión de los espermatozoides a través del cuello uterino. Si además la hembra retiene y sujeta abrazando al macho manteniendo su pene dentro, las contracciones que ocasiona el orgasmo femenino ayuda al esperma a avanzar al interior de la vagina. Como consecuencia directa se establecería una selección sexual de los machos que provocaran un orgasmo en las hembras, de forma que la capacidad para proporcionar placer en el otro sexo se convierte en un nuevo factor a tener en cuenta para la selección del macho mas apto [4].

Interpretación del dimorfismo sexual
Basándose en los datos aportados previamente se podría enmarcar a los humanos en uno o varios patrones conductuales reproductivos:
  • Monogamia con adulterio
  • Monogamia con promiscuidad restringida
  • Poliginandria con monogamia marginal
De esta serie de patrones se presume que sólo las conductas en las que juega un papel importante la selección sexual podrían haber llevado a el dimorfismo actual.
Además es importante remarcar los caracteres neoténicos propios de las mujeres adultas como otra serie de características modeladas por la selección sexual. Se puede considerar que un símbolo de nubilidad, como es la juventud mostrada por las mujeres, sólo es relevante para uniones monógamas con vistas a largo plazo: Mientras los vínculos sexuales fueran transitorios, los machos homínidos podían permitirse mirar poco la edad de sus parejas, no obstante en un régimen de uniones monógamas a largo plazo sólo se obtiene el máximo rendimiento reproductivo cuando el emparejamiento es entre dos jóvenes y no entre un macho joven y una hembra madura.
Una vez nuestros ancestros adaptaron el sistema monógamo como estrategia reproductora preferente, la ventaja de un atractivo habría sido una clara ventaja en caso de enviudamiento. Si los machos poseen una preferencia sobre las adolescentes, una viuda que mantuviera esas características poseería muchas mas opciones de reemparejamiento, con lo que se obtiene un mayor éxito reproductivo [5].

La menopausia
El único homínido cuyas hembras sufren un periodo de infertilidad tan abrupto a mitad de su vida es el hombre. Así como en otros parientes primates la infertilidad es lenta y gradual las mujeres dejan de ser fértiles de forma abrupta. Se relaciona la aparición de la menopausia con los cuidados de las abuelas. En costes energéticos el coste de un embarazo a una mujer en edad avanzada es tan grande que para asegurar la supervivencia de los genes (que es uno de los fines de la reproducción) es mas rentable invertir parte de esa energía en asegurar la reproducción exitosa de los hijos de los hijos (aunque sólo contengan una cuarta parte de la información genética propia).
¿Por qué los hombres no sufren este cambio en su vida? se teoriza que dado que la inversión energética del hombre no es comparable a la de la mujer ante la perspectiva de la reproducción, sigue siendo ventajoso para la propagación de los genes la cópula aún a edades avanzadas. También se podría pensar que los hombres que han sobrevivido hasta edades avanzadas y conservan la capacidad de reproducción tienen características que permitirán a sus hijos una vida saludable, con lo que su eficiencia biológica sería superior que la de aquellos que han sucumbido a las enfermedades, a los ataques de la naturaleza o a los accidentes.

Bibliografía
[1,2,3,4] Campillo Álvarez, J.E. La cadera de eva. El protagonismo de la mujer en la evolución de la especie humana. Ed. Crítica, Barcelona, 2007. 287 pp.
[5] García Leal, A. Sesgos ideológicos en las teorías sobre la evolución del sexo. Tesis UAB. 2006. 335 pp.

28 de mayo de 2009

Origen de la vida: Abiogénesis

Otro video youtubero. Este intenta afrontar la creación de la vida desde un punto termodinámico.


29 de abril de 2009

El crecimiento y desarrollo humano desde una perspectiva evolutiva.

Basado en una conferencia impartida por el Dr. Armando González Martín, Comisión Docente Antropología Física, Dpto. Biología de la Universidad Autónoma de Madrid.


El ciclo vital humano

El ser humano en su periodo infantil no es un adulto en miniatura, si no que se encuentra en pleno desarrollo ontogénico, que comprende un cambio tanto físico (estatura, proporción volumen del cráneo - volumen del cuerpo, etc) y psiquico (aprendizaje, socialización) que determinará y modificará al adulto que se conformará tras los cambios.

A diferencia de muchos de los simios mas relacionados con nosotros el periodo de desarrollo humano es mas complejo y mas duradero que el de estos parientes cercanos, ya que la niñez y la juventud en los humanos quedan separadas por un periodo de adolescencia, que conlleva el desarrollo, en el tiempo dado, de caracteres sexuales y de vínculos y habilidades sociales importantes para el futuro adulto.


Entre los éxitos evolutivos atribuídos tradicionalmente a nuestra especie destacan, con prominente importancia la adquisición de una postura bípeda que mejora el control sobre el medio y la capacidad de manipulación tecnológica y de creación de herramientas que suplieran la carencia de picos, garras u otros elementos duros que pudieramos usar con diversos fines.

Cómo efectos colaterales de estos dos cambios se produjo, debido al bipedismo, una disminución del canal del parto, debido a la capacidad de manipulación de herramientas, un aumento de la capacidad intelectual con el consecuente aumento del tamaño del cráneo. No obstante el tamaño del cráneo ya era demasiado grande.

Una solución ante el problema de la salida del recién nacido por la cadera fué el adelanto del parto, de forma que las crías al nacer son mas pequeñas, aunque mas vulnerables, y pueden atravesar la cadera de la madre.

Para lograr un desarrollo pleno, durante los primero años de vida, las tasas de crecimiento craneal son similares a las que se producen dentro del útero, mientras que el cuerpo crece algo más lento (destacando la importancia del desarrollo postnatal). A los 5 años ya poseemos el 95% del tamaño total que tendrá nuestro cráneo en nuestra vida.


El crecimiendo de nuestro cuerpo se considera lento en comparación con el de simios cómo el chimpancé o el gorila. La aparición de estados adicionales de desarrollo, la niñez y la adolescencia permiten alargar los periodos de crecimiento y aprendizaje, y por tanto retrasar la llegada a la vida adulta.

La niñez se carácteriza por que se poseen caracteres propios de estados lactantes, sin que se de lactancia y cómo se ha mencionado antes, se mantienen unas tasas de aprendizaje y crecimiento que en otras especies emparentadas serían propias de individuos no natos.

La adolescencia surgió como una etapa situada entre la juvenil y la adulta, en la que el cuerpo sufre cambios tanto externos (desarrollo y crecimiento de los carácteres sexuales secundarios) como internos (finaliza el desarrollo del cerebro, maduran los órganos sexuales, aparecen cambios hormonales).

El crecimiento de los humanos modernos tampoco es igual que el de sus parientes simiescos mas cercanos, ya que nuestro crecimiento en altura es rápido, culminando en un estirón a la edad de 14-16 en el que se alcanzará una altura muy cercana a la final. Aún asi el cuerpo crecerá hasta los 18-10 años, pero de forma casi imperceptible.

Los perfiles de crecimiento de una población actúan cómo registro del estado de salud de la misma, por ejemplo, es conocido que en nuestro país la altura media ha ido subiendo de forma gradual cuando la gente ha alcanzado una mayor calidad de vida que le ha permitido cubrir sus necesidades alimentarias con satisfacción.

Los patrones de crecimiento de las especies fósiles son comparados principalmente con modelos modernos (bien de humanos, bien de simios), que permitan obtener una aproximación fiel a la edad del individuo estudiado.

Australopithecus afarensis - niña de Dikika

Vivió en la zona este de áfrica entre los -3,9 y -3 millones de años.

Gracias al dimorfismo sexual dental se clasificó a los restos encontrados en Etiopía cómo pertenecientes a una niña de cerca de 3 años de edad.

Se considera a la niña de Dikika cómo el fósil mas completo de homínidos encontrados hasta la fecha.

Australopithecus africanus - niño de Taung

Se estima que vivió en áfrica entre -3 y -2 millones de años. La dentición del cráneo de este individuo sirvió para calcular la edad a la que le sobrevino la muerte.

Las primeras dataciones del cráneo lo situaron en una edad de 6 años, ya que se hicieron empleando un patrón de crecimiento propio de un humano moderno. No obstante su dentición parece tener mas similitudes con los predecesores de los Australopithecus que con los homínidos, con lo que una revisión de la edad con un modelo de simio concluyó que el niño debió tener entre 3 y 4 años en el momento de su muerte.

Homo ergaster - niño de Nariokotome

Vivió entre -2 y -1 millones de años, y en concreto se le atribuye al cráneo la edad de -1,6 millones de años.

Al individuo se le atribuyó la edad de 11-12 años al morir. Se le considera muy parecido al resto de individuos del genero Homo, llegando a alcanzar los 1,60m de altura y hasta 850cm3 de volumen cráneal. Sus proporciones corporales son muy parecidas a las del ser humano moderno, lo que le ha valido para situarse entre los primeros eslabones evolutivos de la línea que dió lugar al hombre.

Según los modelos humanos actuales, si el individuo hubiera completado su desarrollo podría haber alcanzado los 1,85m de altura, aunque se duda que el Homo ergaster posea esa capadidad de crecimiento.

Homo antecessor - ATD6-69

Encontrado en el yacimiento de La Gran Dolina, Atapuerca, entre estratos fechados en 800.000 años.

Su morfología facial moderna y la forma de su desarrollo dental (que no forma dental, que se considera un cáracter primitivo), implican que el Homo antecessor sufrió ya el proceso de heterocronía (cambio en los tiempos de desarrollo de las especies descendientes respecto a sus antecesores) que hizo aparecer la adolescencia.

Al individuo ATD6-69 se le estimaron 13-15 años de vida en el momento de morir.

Las especies del género Homo

En el yacimiento de Abrigo do Lagar Vielho (Portugal) en el año 1999 se obtuvo el esqueleto de un niño de alrededor de 4 años de edad, datado de 24.500 años de antugedad, que compartía carácteristicas de Homo sapiens y Homo neanderthalensis, con lo que se concluyó rápidamente que se trataba de un híbrido entre poblaciones de Neandertales y Cromagnones. Además el esqueleto fué encontrado en un enterramiento construído deliberadamente para él.

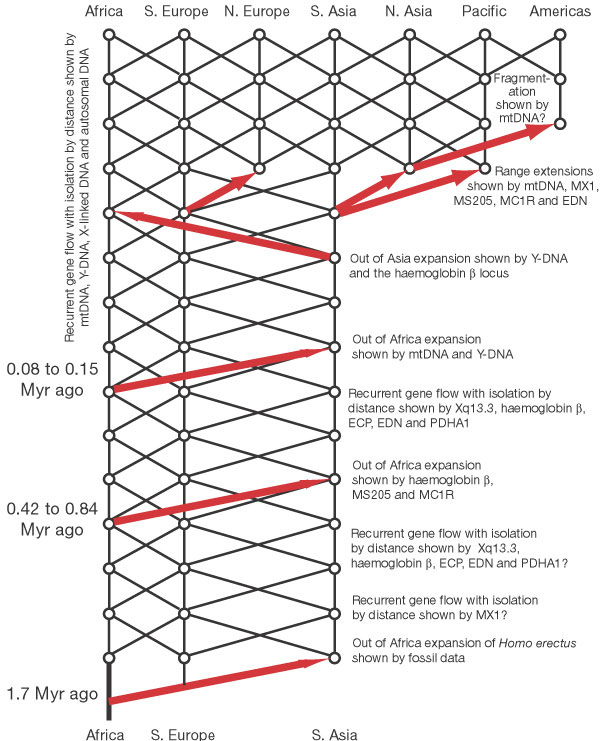
El genetista Alan Templeton planteó en 2002 que sucesivas oleadas migratorias desde África se mezclarían con los homínidos establecidos en las nuevas tierras, produciendo una hibridación que desembocaría en una nueva forma de entender la evolución humana.

En el gráfico siguiente se explica, a grosso modo, cómo podrían darse las transferencias genéticas entre poblaciones de homínidos: